 2023, Vol. 50
扩展功能

文章信息
- 刘萍, 林彬, 初金玲, 王康, 高永林, 崔玉琳
- LIU Ping, LIN Bin, CHU Jinling, WANG Kang, GAO Yonglin, CUI Yulin
- 三角褐指藻丙二酰单酰辅酶A: 酰基载体蛋白转酰基酶的功能分析
- Functional analysis of a malonyl-CoA: ACP transacylase gene from Phaeodactylum tricornutum
- 微生物学通报, 2023, 50(3): 1052-1061
- Microbiology China, 2023, 50(3): 1052-1061
- DOI: 10.13344/j.microbiol.china.220604
-
文章历史
- 收稿日期: 2022-06-26
- 接受日期: 2022-09-17
- 网络首发日期: 2022-11-16


2. 中国科学院烟台海岸带研究所 海岸带生物学与生物资源利用重点实验室, 山东 烟台 264003
2. Key Laboratory of Coastal Biology and Biological Resource Utilization, Yantai Institute of Coastal Zone Research, Chinese Academy of Sciences, Yantai 264003, Shandong, China
脂肪酸广泛用于食品、化妆品、医药等行业,主要依靠化学和微生物进行合成[1-2]。化学合成法有产量低、生产成本较高等缺陷,限制了大规模生产[3],因此,利用微生物合成脂肪酸成为热点。三角褐指藻(Phaeodactylum tricornutum)是一种海洋真核单细胞硅藻[4],生长速度快,基因组小且已完成测序,基因操作技术成熟,是硅藻研究的模式藻种之一[5-6]。同时,该藻富含蛋白质、多糖、脂肪酸及类胡萝卜素等物质[7-8],其中二十碳五烯酸(eicosapentaenoic acid, EPA)的积累量高达35%,被认为是工业生产EPA的良好来源[9]。因此,探索三角褐指藻脂肪酸合成途径具有重要意义。
由乙酰辅酶A到14–18碳脂肪酸的合成称为基础脂肪酸合成,该过程主要由脂肪酸合酶(fatty acid synthase, FAS)催化完成,生物界中主要存在2种FAS。FASI多存在于脊椎动物、酵母和一些细菌中,在1条或2条肽链上,包含脂肪酸合成所需的全部活性位点[10]。FASII主要存在于植物和多数细菌中,其活性位点分布在不同基因产物上,以多亚基复合酶的形式发挥功能[11]。微藻中的FAS与高等植物相似,为FASII型蛋白复合体,定位于质体中。
作为FASII中的关键酶,MCAT以丙二酰CoA和酰基载体蛋白(acyl carrier protein, ACP)为底物,通过转移丙二酰形成脂肪酸生物合成过程中的延伸底物丙二酰单酰ACP[12-14]。以往对MCAT的探讨主要集中在构造上,如油桐的MCAT结构[15],但人们对微藻MCAT及其在脂肪酸生物合成中的功能作用知之甚少。本研究以三角褐指藻基因组序列为基础,克隆一个可能的mcat基因,通过在MCAT缺陷型大肠杆菌L48中表达检验该酶的功能,并进一步分析PtMCAT的底物特异性等,以期为三角褐指藻脂肪酸合成途径研究和代谢工程研究提供理论依据。
1 材料与方法 1.1 藻种和菌种研究所用三角褐指藻购自中国科学院淡水藻种库,编号FACHB-843,三角褐指藻接种于f/2培养基[16]在(21±0.5) ℃培养箱中培养,每天摇瓶2–3次,光照强度为60−70 μmol/(m2·s),12 h/12 h光暗比。
大肠杆菌MCAT缺陷株L48来自美国耶鲁大学CGSC大肠杆菌保藏中心(http://cgsc.biology.yale.edu/),该菌株是温度敏感型的突变株[17],基因型是F–、araC14、lacY1、tsx-57、glnX44 (AS)、gltA5、galK2 (Oc)、fabD89 (ts)、rpsL20 (strR)、xylA5、mtl-1、lldD1、thiE1、tfr-5,该菌株在LB培养基中30 ℃、200 r/min条件下培养。大肠杆菌DH5α感受态细胞购自艾科瑞生物科技有限公司,在LB培养基中于37 ℃、200 r/min条件下培养。
1.2 主要试剂和仪器LB肉汤、琼脂粉,青岛海博生物技术有限公司;高保真酶Apex HF HS DNA Polymerase FS Master Mix、Evo M-MLV反转录预混型试剂盒、SYBR® Green Premix Pro Taq HS预混型qPCR试剂盒等,艾科瑞生物科技有限公司;广谱型植物RNA提取试剂盒、琼脂糖凝胶DNA/PCR产物回收试剂盒,北京诺贝莱生物科技有限公司;ClonExpress Ⅱ One Step Cloning Kit,南京诺唯赞生物科技股份有限公司。实时荧光定量PCR仪,Thermo Fisher Scientific公司。
1.3 生物信息学分析利用ProtParam工具(https://web.expasy.org/protparam)预测MCAT分子质量、等电点、不稳定系数及疏水性。使用在线SOPMA软件(https://npsa-prabi.ibcp.fr/cgi-bin/secpred_sopma.pl)对三角褐指藻MCAT蛋白进行二级结构分析。利用SWISS-MODEL在线工具[SWISS-MODEL Interactive Workspace (expasy.org)]进行三级结构预测。
对MCAT进行系统进化分析,下载NCBI上公布的12个物种MCAT序列:斑马鱼(Danio rerio) NP_001038508.1、猕猴(Macaca mulatta) NP_001248301.1、小家鼠(Mus musculus) NP_001025185.1、黄胸鼠(Rattus tanezumi) NP_001178717.1、破囊壶菌(Aurantiochytrium sp.) AKO69810.1、裂殖壶藻(Schizochytrium) AGG56551.1、同丝绵霉(Achlyahypogyna) OQR91679.1、圆柱脆杆藻(Fragilaria cylindrus) OEU21657.1、微拟球藻(Nannochloropsis gaditana) AGS78408.1、麻风树(Jatropha curcas) NP_001306855.1、亚麻(Linum usitatis simum) AGD95011.1、克里藻(Klebsomidiutm nitens) GAQ89624.1,使用MEGA 7.0软件(https://www.megasoftware.net/)进行多序列比对,构建系统发育树。
1.4 三角褐指藻总RNA的提取及单链cDNA的合成取生长至对数期[细胞密度(5.5–6.0)×106个/mL]的三角褐指藻藻液500 mL,12 000 r/min离心5 min收集藻体后提取总RNA,而后按照反转录试剂盒合成三角褐指藻cDNA第一链,−80 ℃冰箱保存。
1.5 实时荧光定量PCR检测三角褐指藻MCAT转录水平为了鉴定mcat基因在三角褐指藻内的表达规律,对三角褐指藻进行缺氮诱导处理。将培养至对数生长末期(细胞密度6.5×10⁶个/mL)的三角褐指藻转移至无菌离心管中,室温下6 000 r/min离心10 min,接种至f/2培养基或f/2缺氮培养基中培养。实验分为3组,a:正常培养3 d;b:缺氮培养3 d;c:正常培养第0天(对照组)。按照1.4的步骤提取RNA,逆转录成cDNA,设计mcat基因qPCR引物对4-F1/4-R1 (表 1),使用SYBR® Green Premix Pro Taq HS预混型qPCR试剂盒进行,荧光定量PCR。该实验选取18S rRNA为内参基因,RT-qPCR反应体系(20 μL):2×SYBR® Green Pro Taq HS Premix Ⅱ 10 μL,上、下游引物(10 μmol/L)各1 μL,cDNA模板1 μL,ROX ReferenceR Dye 0.4 μL,RNase free ddH2O 6.6 μL。RT-qPCR反应条件:95 ℃ 30 s;95 ℃ 5 s,60 ℃ 30 s,40个循环。每个样品做3次生物学重复,反应结束后按照2−ΔΔCT计算mcat基因的相对表达量。
| Name | Sequence (5′→3′) | Product length (bp) |
| 1-F1 | CTCGAGATGCATCATCATCA | 850 |
| 1-R1 | AAGCTTTTACACCTCAACGT | |
| 2-F1 | ACAAGGCCATGGCTGATATCGGATCCATGGGGATGCTCCTACTGACTG | 870 |
| 2-R1 | TGTCGACGGAGCTCGAATTCCCTAGGTTACACCTCAACGTTTTCACATTCG | |
| 3-F1 | CTACGCCGTGAGTGGCAGTT | 234 |
| 3-R1 | ATGGTTTCGGGATCGGAATG | |
| 4-F1 | GTCGATAGTGGCATGGTTTC | 135 |
| 4-R1 | ACTCACGGCGTAGTTTCCG | |
| 下划线部分代表BamH I限制性内切酶位点 The underlined portion represents the BamH I restriction endonuclease site. |
||
根据三角褐指藻基因组中一段可能的mcat基因序列设计上、下游引物1-F1和1-R1 (表 1),以1.4获得的cDNA为模板,采用高保真酶Apex HF HS DNA Polymerase FS Master Mix扩增mcat基因。PCR反应体系(40 μL):Apex HF HS DNA Polymerase FS Master Mix 20 μL,上、下游引物(10 μmol/L)各2 μL,cDNA模板2 μL,ddH2O 14 μL。PCR反应条件:94 ℃ 30 s;98 ℃ 10 s,55 ℃ 5 s,72 ℃ 10 s 35个循环;72 ℃ 30 s。PCR产物经胶回收后送至北京睿博兴科生物技术有限公司测序,确认获得了特异性和正确的目的基因片段。
1.7 基因的原核表达将pET-30a质粒用BamH I在37 ℃酶切40 min,进行琼脂糖凝胶电泳后回收产物。设计同源重组所需要的引物对2-F1/2-R1扩增目的基因,将目的基因和经BamH I酶切处理过的DNA片段用ClonExpress Ⅱ One Step Cloning Kit进行重组连接,将重组后载体送至青岛睿博兴科生物技术有限公司进行检测。将连接后的载体pET-30a-mcat通过电转染技术(电阻200 Ω,电容25 μF,电压2 kV,时间4.3 ms)导入大肠杆菌缺陷株L48中,将转染后的菌液划线于LB固体培养基,于37 ℃培养过夜。大肠杆菌DH5α菌株用作阳性对照,未转染pET-30a-mcat质粒的L48菌株用作阴性对照。挑取单克隆,37 ℃、200 r/min培育2−3 h,直到OD600值约为0.5−0.8,加入终浓度为0.5 mmol/L的IPTG,28 ℃孵育12 h。
1.8 mcat基因在大肠杆菌中的表达利用荧光定量PCR方法分析三角褐指藻的mcat基因在缺陷株大肠杆菌L48中的表达。将未诱导、诱导培养后第6小时及第12小时的菌液,按照RNA提取试剂盒中的步骤提取细菌基因组RNA,根据反转录试剂盒的步骤合成cDNA。设计引物对3-F1/3-R1 (表 1),扩增片段长度为234 bp。使用SYBR® Green Premix Pro Taq HS预混型qPCR试剂盒进行荧光定量PCR,采用2–ΔΔCT计算mcat基因的相对表达量[18]。RT-qPCR反应体系(20 μL):2×SYBR® Green Pro Taq HS Premix Ⅱ 10 μL,上、下游引物(10 μmol/L)各1 μL,cDNA模板1 μL,ROX ReferenceR Dye 0.4 μL,RNase free ddH2O 6.6 μL。RT-qPCR反应条件:95 ℃ 30 s;95 ℃ 5 s,60 ℃ 30 s,40个循环。每个样品做3次生物学重复。
1.9 脂肪酸成分分析取500 mL诱导培养后的菌液,于4 000 r/min、离心10 min收集大肠杆菌菌体,冻干磨碎后收集菌粉。借鉴杨青等[19]萃取脂肪酸的方法,使用异丙醇-正己烷萃取脂肪酸,并将其甲酯化进行气相色谱分析。气相色谱分析于中国科学院青岛生物能源与过程研究所进行,数据处理采用峰面积归一化法[19]。
2 结果与分析 2.1 生物信息学分析结果三角褐指藻mcat基因的开放阅读框长度为1 059 bp,编码352个氨基酸。蛋白分子质量为37.436 kDa;理论等电点5.00,为酸性蛋白;不稳定系数27.18,属于稳定蛋白;亲水性平均系数0.051,为疏水性蛋白。三角褐指藻MCAT蛋白的二级结构预测见图 1,该蛋白192个氨基酸(54.55%)可能形成α-螺旋(蓝色),104个氨基酸(29.55%)可能形成无规则卷曲(黄色),42个氨基酸(11.93%)可能形成延伸链(红色),14个氨基酸(3.98%)可能形成β-转角(绿色)。三角褐指藻MCAT主要结构为α-螺旋和无规则卷曲,该结构有助于蛋白质的稳定性。三角褐指藻MCAT的三级结构见图 2,主要是α-螺旋和无规则卷曲形成的,与二级结构的预测结果一致。

|
| 图 1 SOPMA软件分析三角褐指藻MCAT的二级结构 Figure 1 Analysis of secondary structure of Phaeodactylum tricornutum MCAT by SOPMA software. |
|
|

|
| 图 2 SWISS-MODEL软件分析三角褐指藻MCAT蛋白的三级结构 Figure 2 SWISS-MODEL software to analyze the tertiary structure of MCAT protein of Phaeodactylum tricornutum. |
|
|
MCAT的系统发育树结果如图 3所示,进化树共分为三大分支,以斑马鱼、猕猴、小家鼠、黄胸鼠为代表的动物聚为一大支;以破囊壶菌、裂殖壶菌、同丝绵霉、圆柱脆杆藻、微拟球藻为代表的原生生物聚为一大支;最后以麻风树、亚麻、克里藻为代表的植物聚为一大支,这与已知的MCAT的分类[20]是一致的。

|
| 图 3 基于mcat基因序列用最大简约法建立的系统发育树 Figure 3 Phylogenetic tree based on the mcat gene sequence using the maximum parsimony method. GenBank登录号显示在括号中;分支上的数字为bootstrap值 GenBank accession No. are shown in parentheses; Bootstrap values are shown at branch points. |
|
|
根据对比结果,三角褐指藻与圆柱脆杆藻聚在一起形成一个系统发育分支,支持度为100,与微拟球藻形成姐妹群,支持度为78,属于protists类型。
2.2 缺氮条件下mcat基因的转录水平利用RT-qPCR分析缺氮处理后mcat基因表达情况,由图 4可以看出,在三角褐指藻缺氮培养3 d后,mcat基因表达量与对照相比上升。三角褐指藻mcat基因在缺氮条件下被诱导,说明缺氮能促进三角褐指藻中mcat基因的表达。
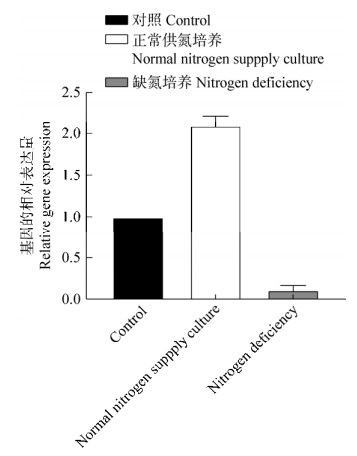
|
| 图 4 mcat基因在正常培养和缺氮培养条件下的转录水平 Figure 4 Transcript level of mcat gene in normal culture and nitrogen-deficient culture conditions. |
|
|
通过电转染技术把pET-30a-mcat质粒转化至大肠杆菌缺陷株L48中,培养过夜后如图 5所示,阴性对照组L48菌株未生长,实验组和阳性对照组大肠杆菌DH5α能够正常长出菌斑,说明克隆获得的三角褐指藻mcat基因在L48菌株中表达并行使功能,使得大肠杆菌MCAT缺陷株L48回复突变。

|
| 图 5 大肠杆菌在LB培养基中的生长状况 Figure 5 Growth of Escherichia coli in LB medium. A:阴性对照,大肠杆菌缺陷株L48. B:实验组,含有mcat基因的突变株L48-2. C:阳性对照,大肠杆菌DH5α A: Negative control, Escherichia coli deficient strain L48. B: Test group, mutant strain L48-2 containing mcat gene. C: Positive control, Escherichia coli DH5α. |
|
|
运用RT-qPCR分析mcat基因的相对表达,结果显示,在培养的第12小时mcat基因的表达量最高,相对表达水平远远高于第6小时(图 6)。因此,在转录水平上证实了mcat基因的表达。

|
| 图 6 6 h和12 h诱导后mcat基因的表达水平 Figure 6 Expression levels of mcat genes after 6 h and 12 h induction. |
|
|
突变株L48-2的脂肪酸组成变化如表 2所示。结果表明,突变株与对照菌株细胞内积累脂肪酸的种类基本相同,主要为C14:0、C14:1、C16:0、C16:1、C17:0、C18:1。mcat基因的突变株C12:0、C14:0、C16:0、C17:1、C18:0及总脂肪的含量相较于对照菌株都有所增加。此外,突变株的脂肪酸组成占比并未发生明显变化,脂肪酸中主要种类仍为C14:1,总脂肪的含量略有增加。结果表明表达mcat基因可促使饱和脂肪酸的合成,这可能是因为该酶对C14:0具有底物偏好性,促进中长链脂肪酸如C16:0和C17:1的合成,这一特点与protits类型MCAT的特性相符[21]。
| Fatty acid | L48 (%) | L48-2 (%) |
| C12:0 | 2.00 | 2.65 |
| C14:0 | 4.66 | 6.10 |
| C14:1 | 42.85 | 28.87 |
| C15:0 | 1.80 | 1.10 |
| C16:0 | 16.18 | 25.70 |
| C16:1 | 13.29 | 11.58 |
| C17:0 | 4.89 | 2.72 |
| C17:1 | 2.50 | 8.60 |
| C18:0 | 0.73 | 0.88 |
| C18:1 | 11.09 | 10.82 |
| Total lipid (% of DW) | 4.38 | 4.90 |
| DW:干重 DW: Dry weight. |
||
本研究克隆了三角褐指藻中一个可能的mcat基因,该基因被导入MCAT缺陷型大肠杆菌L48菌株中,MCAT缺陷型大肠杆菌L48是不能在LB培养基中生长的,但被导入mcat基因后该菌株正常生长,这反映了大肠杆菌MCAT缺陷株L48回复了MCAT的功能。经诱导缺陷型大肠杆菌中表达了mcat基因且改变了脂肪酸组成,促使脂质含量的升高(表 2),发现该酶对C14:0具有底物偏好性,从而促进中长链脂肪酸如C16:0和C17:1的合成,有可能为以后高值化微藻产业提供理论依据。
MCAT已被证明参与Ⅱ型脂肪酸合成,是脂肪酸合成的关键酶之一,通过基因工程表达MCAT被应用于许多物种[13]。之前有研究表明,在大肠杆菌中表达mcat基因,突变菌株中的脂肪酸比对照菌株增加了11%[22]。Cheng等[23]克隆裂殖壶藻的mcat基因,在酿酒酵母中成功表达该基因,而且该基因通过增加MCAT的活性来提高酿酒酵母中脂肪酸的含量。在本研究中,我们对三角褐指藻的mcat基因进行功能验证,发现在L48菌株中表达并行使功能,增加了脂肪酸的含量,由此可判断三角褐指藻的mcat基因能促进脂肪酸合成。
植物脂肪酸具有重要的生理功能,是细胞膜脂的主要成分,能提高植物的抗寒性和抗病性。同时,脂肪酸具有重要的食用和工业价值,在植物中可以合成维持机体正常生长所需的一些脂肪酸如亚油酸和亚麻酸等,满足人们的营养需求;而且其是生产生物柴油、油漆、润滑剂、尼龙等化工产品的重要原料[24-25]。MCAT作为三角褐指藻Ⅱ型脂肪酸合成代谢的重要亚基,对其进行功能验证将有助于微藻脂质产业的研究开发。
| [1] |
WANG KF, DING Y, JI XJ. Metabolic engineering for microbial synthesis of malonyl-CoA derivatives[J]. Chinese Journal of Bioprocess Engineering, 2020, 18(1): 35-43. (in Chinese) 王凯峰, 丁颖, 纪晓俊. 微生物合成丙二酰辅酶A衍生物的代谢工程[J]. 生物加工过程, 2020, 18(1): 35-43. DOI:10.3969/j.issn.1672-3678.2020.01.005 |
| [2] |
DENG WH, ZHAO Y, LI JK, TU YG, MA XJ. The role of free fatty acid in the flavor of several common foods[J]. Science and Technology of Food Industry, 2012, 33(11): 422-425. (in Chinese) 邓文辉, 赵燕, 李建科, 涂勇刚, 马晓娟. 游离脂肪酸在几种常见食品风味形成中的作用[J]. 食品工业科技, 2012, 33(11): 422-425. DOI:10.13386/j.issn1002-0306.2012.11.105 |
| [3] |
FARGIONE J, HILL J, TILMAN D, POLASKY S, HAWTHORNE P. Land clearing and the biofuel carbon debt[J]. Science, 2008, 319(5867): 1235-1238. DOI:10.1126/science.1152747 |
| [4] |
KWON DY, VUONG TT, CHOI J, LEE TS, UM JI, KOO SY, HWANG KT, KIM SM. Fucoxanthin biosynthesis has a positive correlation with the specific growth rate in the culture of microalga Phaeodactylum tricornutum[J]. Journal of Applied Phycology, 2021, 33(3): 1473-1485. DOI:10.1007/s10811-021-02376-5 |
| [5] |
BOWLER C, ALLEN AE, BADGER JH, GRIMWOOD J, JABBARI K, KUO AL, MAHESWARI U, MARTENS C, MAUMUS F, OTILLAR RP, RAYKO E, SALAMOV A, VANDEPOELE KL, BESZTERI B, GRUBER A, HEIJDE M, KATINKA M, MOCK T, VALENTIN K, VERRET F. The Phaeodactylum genome reveals the evolutionary history of diatom genomes[J]. Nature, 2008, 456(7219): 239-244. DOI:10.1038/nature07410 |
| [6] |
APT KE, GROSSMAN AR, KROTH-PANCIC PG. Stable nuclear transformation of the diatom Phaeodactylum tricornutum[J]. Molecular and General Genetics MGG, 1996, 252(5): 572-579. |
| [7] |
CUI Y, THOMAS-HALL SR, CHUA ET, SCHENK PM. Development of a Phaeodactylum tricornutum biorefinery to sustainably produce omega-3 fatty acids and protein[J]. Journal of Cleaner Production, 2021, 300: 126839. DOI:10.1016/j.jclepro.2021.126839 |
| [8] |
KIM SM, JUNG YJ, KWON ON, CHA KH, UM BH, CHUNG D, PAN CH. A potential commercial source of fucoxanthin extracted from the microalga Phaeodactylum tricornutum[J]. Applied Biochemistry and Biotechnology, 2012, 166(7): 1843-1855. DOI:10.1007/s12010-012-9602-2 |
| [9] |
LEI NN. The synthesis of polyunsaturated fatty acids from Phaeodactylum tricornutum[D]. Fuzhou: Master's Thesis of Fujian Normal University, 2020 (in Chinese). 雷娜娜. 三角褐指藻多不饱和脂肪酸合成的研究[D]. 福州: 福建师范大学硕士学位论文, 2020. |
| [10] |
MEHBOOB S, TRUONG K, SANTARSIERO BD, JOHNSON ME. Structure of the Francisella tularensisenoyl-acyl carrier protein reductase (FabI) in complex with NAD+ and triclosan[J]. Acta Crystallographica Section F Structural Biology and Crystallization Communications, 2010, 66(11): 1436-1440. DOI:10.1107/S1744309110039862 |
| [11] |
IZUMIZONO Y, AREVALO S, KOSEKI Y, KUROKI M, AOKI S. Identification of novel potential antibiotics for tuberculosis by in silico structure-based drug screening[J]. European Journal of Medicinal Chemistry, 2011, 46(5): 1849-1856. DOI:10.1016/j.ejmech.2011.02.047 |
| [12] |
ZHANG G, LIU ZB, LI JJ, YU JH, LI YY, LIAO H, ZHOU JY, TAN R. Molecular cloning and sequence analysis of Malonyl-CoA transacylase gene in Cassia obtusifolia L[J]. Biotechnology, 2015, 25(2): 103-108. (in Chinese) 张赶, 刘祖碧, 李娟娟, 俞继华, 李洋洋, 廖海, 周嘉裕, 谭睿. 决明丙二酰CoA: ACP转酰基酶基因的克隆及序列分析[J]. 生物技术, 2015, 25(2): 103-108. |
| [13] |
WANG JY. The study on cloning and function of seven genes involved in the fatty acid metabolism of Camellia oleifera seeds[D]. Changsha: Master's Thesis of Central South University of Forestry & Technology, 2014 (in Chinese). 王建勇. 油茶种子脂肪酸代谢过程7个关键酶基因的克隆与功能研究[D]. 长沙: 中南林业科技大学硕士学位论文, 2014. |
| [14] |
TIAN JH, ZHENG MG, YANG GP, ZHENG L, CHEN JL, YANG BJ. Cloning and stress-responding expression analysis of malonyl CoA-acyl carrier protein transacylase gene of Nannochloropsis gaditana[J]. Gene, 2013, 530(1): 33-38. DOI:10.1016/j.gene.2013.08.002 |
| [15] |
LIU ML, TAN XF, LONG HX, WANG Z, LIU L, WANG SS. Cloning and sequence analysis of malonyl CoA: ACP transacylase from Vernicia fordii[J]. Non-wood Forest Research, 2014, 32(4): 1-7. (in Chinese) 刘美兰, 谭晓风, 龙洪旭, 王哲, 刘璐, 王僳僳. 油桐丙二酰单酰CoA: ACP转酰基酶的克隆与序列分析[J]. 经济林研究, 2014, 32(4): 1-7. |
| [16] |
GUILLARD RRL. Culture of phytoplankton for feeding marine invertebrates[A]//Culture of Marine Invertebrate Animals[M]. Boston, MA: Springer US, 1975: 29-60.
|
| [17] |
VERWOERT IIGS, BROWN A, SLABAS AR, STUITJE AR. A Zea mays GTP-binding protein of the ARF family complements an Escherichia coli mutant with a temperature-sensitive malonyl-coenzyme A: acyl carrier protein transacylase[J]. Plant Molecular Biology, 1995, 27(3): 629-633. DOI:10.1007/BF00019329 |
| [18] |
WANG DH, YANG YB, LEI Y, MA YB, WANG DD, LOU R. Effect of Glycyrrhiza polysaccharide in diets on growth performance, body size index and IGF-1 gene relative expression in broilers[J]. Modern Journal of Animal Husbandry and Veterinary Medicine, 2021(12): 28-31. (in Chinese) 王丹晖, 杨又兵, 雷莹, 马彦博, 王丁丁, 娄然. 日粮中添加甘草多糖对肉鸡生长性能、体尺以及IGF-1基因相对表达量的影响[J]. 现代畜牧兽医, 2021(12): 28-31. |
| [19] |
YANG Q, SUN ZY, MANDLAA, WANG J, LIU J, JIN JJ, CHEN ZJ. Effect of heterologous expression of acetyl-CoA carboxylase in Escherichia coli on fatty acid production[J]. Food Research and Development, 2021, 42(23): 150-155. (in Chinese) 杨青, 孙子羽, 满都拉, 王佳, 刘瑾, 金晶晶, 陈忠军. 异源表达乙酰辅酶A羧化酶对大肠杆菌产脂肪酸的影响[J]. 食品研究与开发, 2021, 42(23): 150-155. DOI:10.12161/j.issn.1005-6521.2021.23.024 |
| [20] |
WANG X, LIU YH, WEI W, ZHOU X, YUAN W, BALAMURUGAN S, HAO TB, YANG WD, LIU JS, LI HY. Enrichment of long-chain polyunsaturated fatty acids by coordinated expression of multiple metabolic nodes in the oleaginous microalga Phaeodactylum tricornutum[J]. Journal of Agricultural and Food Chemistry, 2017, 65(35): 7713-7720. DOI:10.1021/acs.jafc.7b02397 |
| [21] |
CHEN JW, LIU WJ, HU DX, WANG X, BALAMURUGAN S, ALIMUJIANG A, YANG WD, LIU JS, LI HY. Identification of a malonyl CoA-acyl carrier protein transacylase and its regulatory role in fatty acid biosynthesis in oleaginous microalga Nannochloropsis oceanica[J]. Biotechnology and Applied Biochemistry, 2017, 64(5): 620-626. |
| [22] |
ZHANG XJ, AGRAWAL A, SAN KY. Improving fatty acid production in Escherichia coli through the overexpression of malonyl coA-acyl carrier protein transacylase[J]. Biotechnology Progress, 2012, 28(1): 60-65. |
| [23] |
CHENG RB, GE YQ, YANG B, ZHONG XM, LIN XZ, HUANG Z. Cloning and functional analysis of putative malonyl-CoA: acyl-carrier protein transacylase gene from the docosahexaenoic acid-producer Schizochytrium sp. TIO1101[J]. World Journal of Microbiology and Biotechnology, 2013, 29(6): 959-967. |
| [24] |
LI CZ, LI ZM. Research progress on biosynthesis and physiological functions of plant fatty acids[J]. Hunan Forestry Science & Technology, 2009, 36(6): 45-49. (in Chinese) 李昌珠, 李正茂. 植物脂肪酸的生物合成及其生理功能的研究进展[J]. 湖南林业科技, 2009, 36(6): 45-49. |
| [25] |
LU SF. Biosynthesis and gene engineering of plant fatty acids[J]. Chinese Bulletin of Botany, 2000, 35(6): 481-491. (in Chinese) 卢善发. 植物脂肪酸的生物合成与基因工程[J]. 植物学通报, 2000, 35(6): 481-491. |